30.09.2026 à 12:07
Comment les arbres ajustent activement leur posture pour rester les plus droits possible
Félix Hartmann, ingénieur de recherche en modélisation de la croissance des plantes, Inrae
Bruno Moulia, Directeur de Recherches , Biomécanique et mécanobiologie végétales, Inrae
Mélanie Decourteix, Maître de conférences en biologie végétale, Université Clermont Auvergne (UCA)
Texte intégral (3271 mots)
L’ESSENTIEL
Envers et contre toutes les bourrasques et les tempêtes, certains arbres poussent droit, imperturbables.
On sait, depuis les années 1950, que les troncs accueillent un type de bois particulier qui agit comme un muscle et peut courber la direction de pousse.
On réalise aujourd’hui que ces « muscles » peuvent servir à se décourber quand l'arbre perçoit que son tronc n'est pas droit.
Pour un arbre, pousser droit et vers le haut n’a rien d’évident. Une tempête ou un glissement de terrain peuvent l’incliner, voire le coucher à terre. Mais alors l’arbre se courbe progressivement pour que son sommet revienne vers la verticale. À l’inverse, si une trouée de lumière apparaît à la suite de la chute d’un voisin, l’arbre a tendance à se courber vers l’origine de la lumière.
Toutes ces courbures, dans un sens ou dans l’autre, pourraient rendre le tronc bien tortueux. Pourtant, on observe dans les futaies de grands arbres bien droits, malgré les tempêtes et les trouées de lumière.
Les arbres ont en fait une capacité d’adaptation posturale. En effet, une forme rectiligne et verticale leur assure l’accès le plus rapide à la lumière, ce qui est utile en forêt où la compétition peut être rude. Elle réduit aussi leur ploiement sous l’accroissement de leur poids et le risque de casse au vent.
Cette capacité est essentielle alors que les évènements extrêmes deviennent de plus en plus fréquents, et où les arbres subissent des coups de vent qui les renversent, des pertes de stabilité du sol ou même des glissements de terrain lors de fortes pluies…
Au cours de l’évolution, les plantes ont acquis la capacité à percevoir la direction de la gravité et celle d’où vient la lumière. Elles perçoivent aussi leur propre courbure – et nous venons de montrer comment les arbres parviennent à la corriger.

Comment les plantes perçoivent leur environnement… et leur propre forme
Les plantes perçoivent leur environnement et peuvent s’y adapter grâce à plusieurs sens.
Par exemple, des photorécepteurs particuliers leur permettent de détecter une source lumineuse, c’est la « photoperception ».
Pour percevoir la direction de la gravité (« graviperception »), elles disposent tout le long de leurs tiges de cellules spécialisées qui indiquent où est le bas, grâce à de gros grains d’amidon, les « statolithes », qui s’accumulent au fond des cellules par gravité.
Ces grains rappellent les otolithes, les petits cailloux de notre oreille interne responsables de notre sens de l’équilibre. Mais alors que nos otolithes sont très sensibles aux accélérations, ce qui nous donne le tournis dans les manèges, les statolithes des plantes indiquent seulement l’inclinaison de la tige. Ils s’agitent en effet dans un milieu cellulaire très visqueux, ce qui amortit les accélérations.
Enfin, notre équipe a montré en 2013 que les plantes perçoivent leur propre courbure par « proprioception », selon un processus qu’il reste à découvrir.
Un « muscle en bois » pour se courber
En réponse à ses perceptions, un arbre peut courber activement son tronc. En effet, on sait depuis les années 1950 que le bois ne fait pas que soutenir le poids de l’arbre comme un squelette : il peut aussi servir de muscle.
Chez les espèces feuillues, ce « bois-muscle » s’appelle le bois de tension. Il se forme sur la face supérieure des tiges inclinées. Chaque nouvelle fibre de bois formée, en se contractant, contribue à courber progressivement le tronc sur des semaines ou des années (plus le tronc est épais, plus ce processus requiert de fibres). Ce bois est redouté des scieurs, car la tension accumulée du fait de gros secteurs de bois de tension peut provoquer des éclatements à l’abattage, ou des déformations après découpe.
Mais le bois de tension peut-il jouer le rôle inverse, c’est-à-dire décourber le tronc en réponse à sa proprioception ? Notre hypothèse était que du bois de tension se formerait sur la face opposée à la courbure : on aurait alors un couple de zones de bois de tension de chaque côté du tronc, qui agiraient successivement comme des muscles antagonistes, tels nos muscles dorsaux et abdominaux qui nous permettent de nous « tenir droit ».
Mais pour observer clairement la proprioception à l’œuvre, il faut annuler les autres perceptions, en particulier la photoperception et la graviperception. C’est ce que nous avons fait, grâce à un dispositif expérimental original.
Bain de lumière et manège à plantes
Nous avons placé de jeunes peupliers dans des sphères d’1,5 mètre de diamètre, à l’intérieur desquelles la lumière arrive de toutes les directions à la fois. Dans ce dispositif, la lumière est toujours utilisée par les peupliers pour leur photosynthèse, mais elle n’a aucune influence sur leur direction de croissance.

Pour annuler la perception de la direction de la gravité, nous avons combiné la sphère avec un système déjà existant, appelé « clinostat ». Il s’agit d’un socle tournant autour d’un axe horizontal à la vitesse d’un à deux tours par minute. Lorsqu’une plante est placée dans un clinostat, ses organes sont orientés alternativement vers le haut et le bas. Les statolithes se retrouvent mis en suspension dans les cellules, répartis aléatoirement, ce qui prive la plante de la perception du haut et du bas.
Courbure et décourbure d’un peuplier
Au début de l’expérience, chaque peuplier est placé à l’horizontale dans une sphère. Le clinostat n’est pas encore activé. Le peuplier perçoit donc son inclinaison par rapport à la gravité (sans influence de la lumière) et se courbe vers le haut, comme attendu. Une dizaine de jours suffisent pour qu’une courbure bien nette apparaisse. C’est alors que le clinostat est enclenché, ce qui suspend la perception de la gravité. Il ne reste plus à l’arbre pour s’orienter qu’une seule perception, celle de sa propre courbure, la proprioception. Au cours des semaines qui suivent, le tronc du peuplier se décourbe progressivement jusqu’à devenir rectiligne.

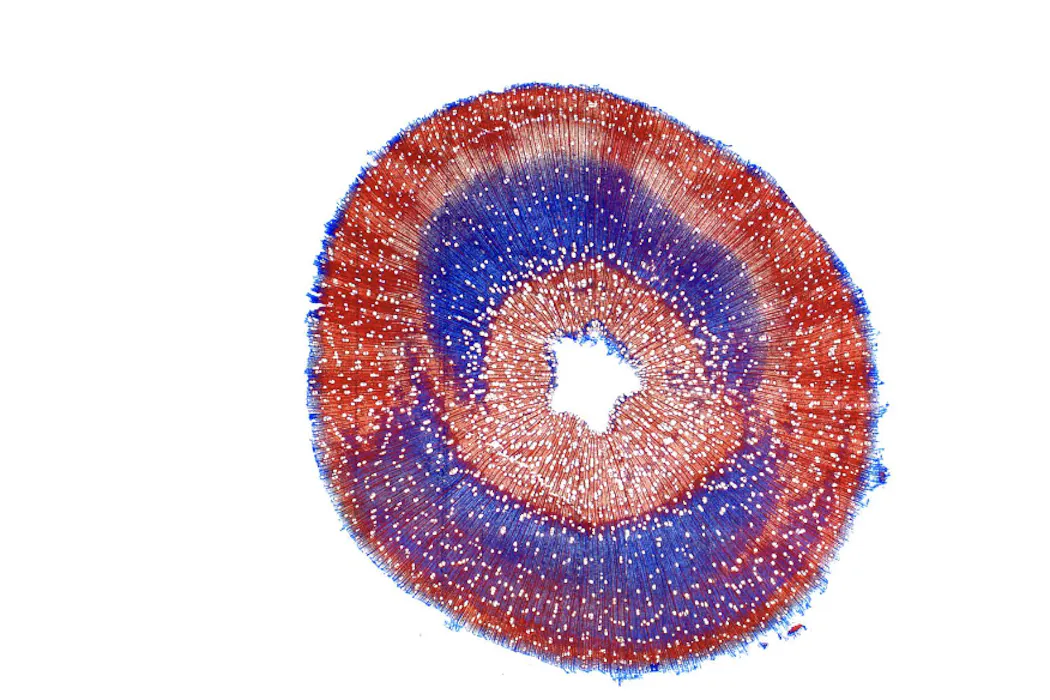
À la fin de l’expérience, nous avons fait des coupes transversales des troncs de peupliers. Une coloration spécifique permet de mettre en évidence le bois de tension. Et comme le bois se forme en couches successives, on peut estimer la période de production des cellules de bois à partir de leur position par rapport au centre du tronc.

Sur ces coupes, nous avons observé que du bois de tension s’était formé sur la face supérieure durant la première phase de l’expérience, quand le clinostat n’était pas activé. Grâce à lui, le tronc a pu se courber vers le haut. Puis dès l’enclenchement du clinostat, cette formation de bois de tension a cessé et un nouveau bois de tension a commencé à se former sur la face opposée, comme nous en avions fait l’hypothèse.
C’était la preuve que le mouvement de décourbure du tronc a été engendré par du bois de tension, en réponse à la proprioception, et jouant un rôle équivalent à celui d’un muscle antagoniste chez un animal.
Ainsi, nous avons mis en évidence une boucle sensorimotrice de contrôle postural, une capacité que l’on pensait réservée aux seuls animaux.
S’adapter à l’environnement, sans nerfs ni cerveau
Dans l’environnement naturel de l’arbre, toutes les perceptions se combinent dans des proportions variables. L’arbre est capable d’intégrer ces différents signaux pour y réagir adéquatement en produisant du bois de tension quand il le faut, là où il le faut.
Dans des arbres non clinostatés, nous avons toujours retrouvé des secteurs de bois de tension opposés permettant de rectifier le tronc, qui avaient probablement été négligés comme des anomalies non significatives dans les études antérieures.
C’est ainsi qu’un arbre adapte constamment sa posture à son environnement, sans système nerveux central.
Des arbres en forme pour des forêts et une exploitation plus robustes
Nous l’avons vu, une forme rectiligne est essentielle pour les arbres car c’est ce qui leur permet d’accéder à la lumière et de moins ployer sous leur propre poids au risque de casser.
Mais ces capacités sensorielles et d’adaptation sont aussi utiles pour nous, les humains, afin de disposer de fûts droits et avec un bois homogène pour son usage en construction et ameublement. Si, pendant longtemps, les recherches sur la qualité des bois ont essayé de sélectionner des arbres qui ne produisaient quasiment pas de bois de tension, nos recherches montrent désormais que c’était une erreur. Pour obtenir des fûts rectilignes sans gros secteurs de bois de tension, ce qu’il faut, ce sont des arbres alliant sensibilité proprioceptive et puissance de leur bois de tension pour que les corrections de posture soient efficaces et rapides.
Le projet a bénéficié du soutien de l’Agence nationale de la recherche (ANR), qui finance en France la recherche sur projets (Perception de la gravité chez les plantes : de la cellule à la réponse biomécanique. — GRAP2 ANR-13-BSV5-0005. L’ANR a pour mission de soutenir et de promouvoir le développement de recherches fondamentales et finalisées dans toutes les disciplines, et de renforcer le dialogue entre science et société. Pour en savoir plus, consultez le site de l’ANR.

Félix Hartmann a reçu des financements de l'ANR.
Pour les travaux discutés ici Bruno MOULIA a reçu des financements de : French Space Agency (CNES). IDEX-ISITE initiative 16-IDEX- 0001 and the International Research Center on Sustainable AgroEcosystems (ISITE CAP20-25). Plus largement ses recherches ont été financées par l'ANR et par l'Europe , ainsi que, de manière ponctuelle, par le Fonds de Soutien à l'Obtention Végétale et par l'Institut Français du Caoutchouc
Mélanie Decourteix a reçu des financements dans le cadre des appels à projets du CNES, de l'IRC-SVSAE (I-SITE) de Clermont-Ferrand, de Clermont Auvergne Metropole, du département AES d'INRAe et de l'ANR.
30.09.2026 à 12:06
Shampoing solide : pourquoi est-il si difficile de changer une formule et nos habitudes ?
Véronique Sadtler, Professeure, Université de Lorraine
Texte intégral (3010 mots)
L’ESSENTIEL
Depuis les années 1930, le shampoing liquide a façonné nos attentes de mousse, de démêlage et de douceur.
Formuler un shampoing solide performant est un vrai défi technique.
Pour adopter durablement le solide, il faudra peut-être aussi revoir ce que nous attendons d’un shampoing.
Se laver les cheveux semble aujourd’hui d’une grande simplicité. Pourtant, nous attendons beaucoup du shampoing que nous utilisons : qu’il élimine l’excès de sébum et les salissures, mais aussi qu’il mousse suffisamment, se répartisse et se rince rapidement, tout en laissant les cheveux brillants, faciles à démêler et agréables au toucher.
À cette liste déjà longue s’ajoutent désormais souvent d’autres exigences : réduire les emballages, particulièrement les plastiques, transporter moins d’eau et, plus largement, diminuer l’impact environnemental du produit.
Le shampoing solide semble apporter une réponse à plusieurs d’entre elles. Pourtant, après un engouement rapide, sa progression marque le pas. Pourquoi ?
Du savon au shampoing moderne
Avant le développement des détergents synthétiques au XXᵉ siècle, le savon est employé pour de nombreux usages de lavage, aussi bien domestiques que pour l’hygiène corporelle. Il sert notamment à nettoyer les cheveux.
Cependant, le savon présente des limites lorsqu’il est utilisé sur les cheveux. Son caractère alcalin favorise le gonflement de la fibre et modifie l’état de sa surface. En présence d’une eau riche en calcium ou en magnésium, il peut également former des dépôts insolubles, difficiles à éliminer des cheveux et du cuir chevelu. Les cheveux peuvent alors paraître ternes, rêches et difficiles à coiffer.
Ces inconvénients conduisent au développement de produits spécifiquement conçus pour le lavage des cheveux.
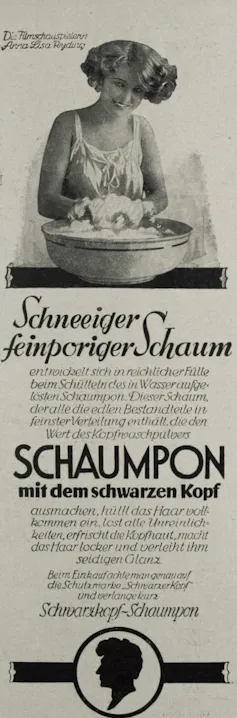

Le savon cède peu à peu la place à d’autres tensioactifs, dits synthétiques, qui offrent notamment la possibilité de travailler à des pH mieux adaptés aux cheveux et au cuir chevelu. Les tensioactifs sont les molécules qui permettent d’assurer le liant entre l’eau et les graisses et donc de laver. Les produits lavants utilisant ces molécules à la place du savon sont désignés sous le terme de syndets, contraction de synthetic detergents. À partir de 1930, les premiers shampoings sans savon sont commercialisés en Europe et aux États-Unis.
Au fil des décennies, la composition des shampoings se sophistique : différents tensioactifs sont associés pour ajuster le nettoyage et la mousse, des agents conditionnants facilitent le démêlage et améliorent le toucher, tandis que d’autres ingrédients agissent sur la viscosité, la stabilité ou les propriétés sensorielles du produit.
Au fil de ces innovations, le shampoing ne se contente plus de laver : il devient aussi un produit de soin et de plaisir d’utilisation.
Quand les progrès techniques deviennent des habitudes
Parallèlement, les pratiques évoluent. En France, au milieu du XXᵉ siècle, de grandes campagnes publicitaires font la promotion de l’hygiène capillaire jusque dans les écoles. Elles mettent en scène la brillance, la mousse et le plaisir du lavage.
Parmi les nombreux jeux radiophoniques, figure un « Concours de mousse », signe de la place que celle-ci prend peu à peu dans la représentation du shampoing. La mousse participe à la répartition du produit mais son abondance ne mesure pas directement l’efficacité du nettoyage. Elle joue surtout un rôle important dans la perception de la performance et l’expérience d’utilisation du shampoing. Des travaux très récents montrent que cette expérience possède même une dimension émotionnelle, jusqu’au son produit par la mousse, qui peut modifier la manière dont elle est perçue.
D’autres propriétés participent également à l’expérience d’utilisation, comme la facilité de rinçage, le démêlage ou le toucher des cheveux après séchage.
À force d’innovations, ces performances autrefois nouvelles sont devenues des critères de qualité que nous considérons désormais comme allant de soi.
Puis le shampoing devint solide
C’est dans ce contexte que s’inscrit l’essor du shampoing solide, au sein d’un mouvement plus large touchant l’ensemble de la cosmétique : déodorants, nettoyants pour le visage, dentifrices ou après-shampoings se déclinent désormais sous des formes solides.
Les raisons de cet engouement sont faciles à comprendre. La quantité de produit nécessaire par usage peut être sensiblement plus faible et sa forme concentrée permet également de réduire fortement l’emballage, notamment plastique, voire de s’en passer selon les conditionnements. Cela permet aussi de réduire certains impacts environnementaux liés au transport et au conditionnement.
La faible teneur en eau modifie aussi les contraintes microbiologiques. Une enquête récente portant sur 172 shampoings solides commercialisés dans quatre pays européens montre que la présence et la concentration des conservateurs y sont moins importantes que dans les shampoings liquides.
À ces caractéristiques s’ajoute une image de simplicité et de naturalité fréquemment associée, à tort ou à raison, au format solide. Cependant, à elles seules, ces caractéristiques ne suffisent pas à garantir un meilleur bilan environnemental sur l’ensemble du cycle de vie. Par exemple, pour un shampoing, la phase d’utilisation, et notamment l’eau chaude consommée sous la douche, peut représenter une part importante des impacts.
Le mouvement a néanmoins été rapide. En France, la proportion de consommateurs ayant acheté au moins un cosmétique solide est passée de 1 % en 2019 à 7,5 % en 2021 ; le marché atteignait 85,5 millions d’euros entre novembre 2021 et octobre 2022.
Le shampoing solide est devenu l’une des vitrines les plus visibles de cette nouvelle cosmétique.
Solide ne veut pas dire savon
Le retour à une forme solide n’est pas pour autant un retour au savon. Pour conserver les performances acquises par les shampoings modernes sans retrouver notamment les inconvénients liés au caractère alcalin du savon, de nombreux shampoings solides reposent sur des tensioactifs autres que le savon : ce sont des syndets solides.
« Synthétique » ne signifie d’ailleurs pas nécessairement « issu du pétrole ». Des tensioactifs sont obtenus par synthèse chimique tout en incorporant des matières premières d’origine renouvelable, par exemple issues de corps gras, de sucres ou d’acides aminés. La molécule finale reste le résultat d’une transformation chimique.
Le format change donc profondément, mais pas nécessairement les principes chimiques du lavage. L’enjeu consiste plutôt à conserver les acquis du shampoing moderne dans une architecture très différente. Et c’est là que les difficultés commencent.
Tous les ingrédients employés dans un shampoing liquide ne peuvent pas être transposés tels quels dans un pain solide. Certains tensioactifs sont disponibles sous forme liquide ou contiennent eux-mêmes une quantité non négligeable d’eau, ce qui restreint leur incorporation dans une formulation très peu aqueuse.
L’eau, de son côté, n’est pas un simple constituant que l’on pourrait retirer sans conséquence : elle sert de milieu de dispersion ou de solubilisation, contribue à la texture et facilite la répartition rapide du produit sur la chevelure.
Un shampoing solide ne résulte donc pas simplement du retrait de l’eau d’une formule liquide : il faut conserver les fonctions attendues du shampoing tout en construisant un produit aux propriétés physiques adaptées à sa fabrication et à son utilisation.
Passer au solide impose par conséquent de reformuler entièrement, pas seulement de concentrer une recette existante.
Les difficultés rencontrées dans les formulations solides concernent la dureté et la plasticité du pain, sa fissuration, son ramollissement, sa perte de masse à l’usage ou encore la qualité de la mousse obtenue.
Le pain doit être assez cohésif pour être fabriqué, transporté et manipulé, assez résistant pour ne pas se déliter rapidement dans l’atmosphère humide d’une salle de bains, mais suffisamment accessible à l’eau pour délivrer efficacement ses constituants pendant l’utilisation.
À ces contraintes propres au format solide, s’ajoute la nécessité de retrouver la douceur et le démêlage auxquels les shampoings liquides nous ont habitués. Le remplacement d’ingrédients conventionnels par des alternatives d’origine naturelle ou biosourcée pose aussi des défis de performance, de stabilité et de compatibilité avec les formulations.
Or, améliorer une propriété peut en dégrader une autre. C’est le quotidien de la formulation : rechercher le meilleur compromis entre performances, propriétés sensorielles et nouvelles exigences de durabilité plutôt qu’une formule parfaite qui n’existe pas.
L’écologie suffit-elle à changer nos habitudes ?
À cette difficulté technique s’en ajoute une autre : celle de nos comportements.
Après l’essor spectaculaire du début des années 2020, le marché français des cosmétiques solides a reculé de 3,2 % en volume en 2022 et 2023. Ce chiffre ne permet évidemment pas d’attribuer cette inflexion au shampoing, encore moins à sa seule sensorialité : prix, distribution, contexte économique ou évolution de l’offre peuvent également intervenir. Il montre en revanche qu’un engouement initial ne conduit pas nécessairement à l’installation durable d’une nouvelle pratique.
De surcroît, connaître les bénéfices d’une solution ou adhérer à un objectif ne suffit pas toujours à modifier les pratiques. Les comportements dépendent aussi des habitudes, des normes sociales, des contraintes matérielles et du contexte dans lequel ils s’inscrivent.
Le shampoing solide fournit un cas très concret de cette difficulté. Une étude consacrée spécifiquement aux raisons de sa non-adoption montre l’importance des habitudes et de l’image du produit. Les réponses font également ressortir des freins fonctionnels : conservation du pain sous la douche, sensation laissée sur les cheveux ou différences de performances entre produits.
Les consommateurs peuvent donc souhaiter réduire leurs emballages et la quantité d’eau transportée, tout en continuant à rechercher les qualités sensorielles acquises avec les produits qu’ils utilisent depuis longtemps.
Et si l’innovation consistait à faire évoluer nos attentes ?
Reste alors à savoir si l’écoconception doit reproduire à l’identique tout ce que plusieurs décennies d’innovation nous ont appris à attendre d’un shampoing. Une mousse un peu différente, un nouveau geste à acquérir ou une texture inhabituelle constituent-ils forcément des régressions ?
Pendant des décennies, l’innovation a façonné les produits, mais aussi les usages et les critères par lesquels nous les jugeons. La transition vers des produits plus sobres pourrait donc appeler un mouvement réciproque : continuer à améliorer leur conception, mais accepter aussi que certaines pratiques et certaines manières d’apprécier leurs performances puissent changer.
Le défi ne serait alors plus seulement de proposer le shampoing en bouteille ou sous forme solide, mais de faire évoluer ensemble les produits, leurs usages et ce que nous en attendons.

Véronique Sadtler ne travaille pas, ne conseille pas, ne possède pas de parts, ne reçoit pas de fonds d'une organisation qui pourrait tirer profit de cet article, et n'a déclaré aucune autre affiliation que son organisme de recherche.
30.09.2026 à 12:06
Le cadmium s’attaque (aussi) aux amphibiens
Pélagie Douchez, Doctorante en écotoxicologie, Université de Lille
Matthieu Marin, Maître de conférence en biologie, Université de Lille
Texte intégral (2434 mots)

L’ESSENTIEL
Présent partout, le cadmium est aussi un danger pour la santé des espèces sauvages et des écosystèmes.
Les amphibiens font partie des vertébrés aquatiques les plus menacés et sont particulièrement sensibles à ce polluant.
Des études récentes pointent les effets du cadmium sur ces animaux : déformation du cœur, baisse de la reproduction, modifications du comportement…
Les récentes alertes sanitaires ont remis le cadmium sur le devant de la scène. Pour nous, chercheurs, ce n’est pourtant pas un sujet nouveau. Depuis des décennies, nous étudions ce métal, naturellement présent dans l’environnement, mais dont les concentrations ont été fortement accrues par les activités humaines.
Aujourd’hui, on sait que ce métal est cancérogène et qu’il présente des effets toxiques sur plusieurs organes. Mais le cadmium ne menace pas seulement les êtres humains : il affecte une multitude d’espèces, perturbe le fonctionnement des écosystèmes et représente un risque majeur pour la biodiversité.
L’objectif de nos recherches est de mieux comprendre les effets du cadmium, particulièrement sur les écosystèmes aquatiques, en étudiant son impact sur une espèce d’amphibien. Nos travaux ont montré des effets du cadmium sur l’activité et la morphologie cardiaque, ainsi que sur la formation des têtards et sur le comportement des animaux.
Un polluant omniprésent
Le cadmium est un composé inorganique que l’on retrouve partout dans l’environnement. Il contamine aussi bien l’atmosphère, les sols que les milieux aquatiques. Utilisé depuis plusieurs décennies, il sert notamment dans les procédés métallurgiques, la fabrication de batteries et certains usages agricoles, en particulier via les engrais phosphatés qui peuvent contenir du cadmium comme impureté.
En raison de sa persistance dans l’environnement, de sa toxicité dès de très faibles concentrations, de sa mobilité dans certains types de sols et de sa capacité à s’accumuler dans les organismes vivants, le cadmium représente une menace majeure pour la biodiversité. Il affecte l’ensemble du vivant, depuis les micro-organismes du sol jusqu’aux mammifères, en perturbant le fonctionnement des écosystèmes et en altérant de nombreuses fonctions biologiques.
Parmi les groupes les plus vulnérables figurent les amphibiens. Leur peau hautement perméable, leur cycle de vie partagé entre les milieux aquatiques et terrestres et leur mode de reproduction – la fécondation ayant souvent lieu dans l’environnement, et non pas à l’intérieur de l’organisme – les rendent particulièrement sensibles à l’exposition au cadmium. Cette vulnérabilité est d’autant plus préoccupante que les amphibiens connaissent un déclin mondial marqué. Selon l’Union internationale pour la conversation de la nature (UICN), 41 % des espèces d’amphibiens sont aujourd’hui menacées d’extinction à l’échelle mondiale. En France, toutes les espèces d’amphibiens bénéficient d’un statut de protection.
Comprendre les effets du cadmium en laboratoire
Chez l’être humain, le cadmium est classé comme cancérogène certain par le Centre international de recherche sur le cancer (CIRC). Il est également reconnu pour ses effets de perturbateur endocrinien ainsi que pour sa toxicité au niveau du système nerveux, des reins et du système immunitaire. Plus récemment, des effets au niveau cardiaque ont aussi été démontrés. Ces effets toxiques sont également observés chez de nombreuses espèces animales, soulignant les risques que représente ce contaminant pour la santé des organismes et le maintien de la biodiversité.
Au laboratoire, notre objectif est de comprendre les effets du cadmium à travers une approche pluridisciplinaire et de l’échelle moléculaire jusqu’à celle de l’individu. Une meilleure compréhension des mécanismes de toxicité du cadmium devrait nous permettre d’en identifier les cibles, qui constituent les marqueurs spécifiques d’une exposition à ce contaminant. La nature de ces marqueurs dépend de l’échelle considérée : il peut s’agir de modifications comportementales ou de la présence de protéines particulières. Nous nous intéressons notamment à des biomarqueurs protéiques de contamination, dont les variations pourraient constituer des indicateurs précoces et spécifiques de l’exposition à ce contaminant chez les amphibiens.

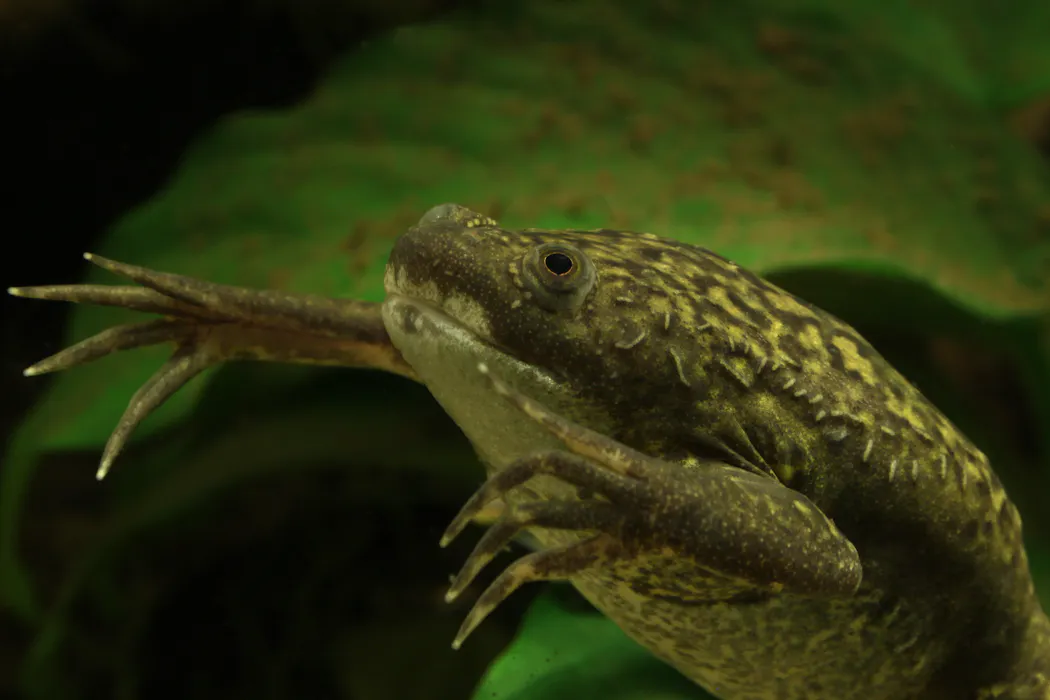
Notre modèle expérimental est le xénope (Xenopus laevis). Originaire d’Afrique australe, cette espèce exotique invasive en France est utilisée depuis plusieurs décennies comme organisme modèle en biologie cellulaire, en biologie du développement et en embryologie. Elle s’est également imposée plus récemment en écotoxicologie. Son développement rapide et directement dans l’eau, ainsi que sa peau perméable, facilitant l’absorption des contaminants, en font un modèle particulièrement pertinent pour l’étude des effets des polluants environnementaux.
Baisse de la fécondité et têtards désorientés
Notre protocole expérimental se concentre sur les premiers stades du développement embryonnaire. Les embryons de xénope sont exposés à différentes concentrations de cadmium, d’un niveau analogue à celui réellement rencontré dans l’environnement jusqu’à des concentrations bien plus élevées. Nous les y exposons dès la fécondation jusqu’à la fin de la formation des principaux organes, correspondant à six jours de développement. Les têtards mesurent alors environ 7 millimètres de long, ont un intestin bien enroulé et sont capables de se déplacer. Nous réalisons ensuite des études comportementales, biométriques, morphologiques et physiologiques, notamment sur les effets cardiaques du cadmium.
On observe ainsi que chez le xénope, une trop forte concentration de cadmium entraîne une diminution significative du taux de fécondation. Le taux de survie est également impacté négativement à la suite d’une exposition. Cette trop forte mortalité nous a poussés à adapter la gamme de concentration testée, en nous rapprochant considérablement des concentrations environnementales.
À l’aide d’un logiciel de tracking, nous avons suivi des têtards sains et des têtards contaminés pour mesurer plusieurs paramètres : la vitesse de nage, la distance parcourue, et leur réponse à des variations de la luminosité ainsi qu’à des vibrations mimant un prédateur. Notre étude a mis en évidence des modifications comportementales. Les têtards parcourent notamment une distance moindre lorsqu’ils sont exposés au cadmium.
Le cœur, particulièrement touché par le cadmium

Ces têtards font aussi l’objet d’études morphologiques et biométriques. Nous mesurons en particulier leur longueur et l’écart entre leurs yeux. Là aussi, nous constatons que les têtards exposés au cadmium présentent de nombreuses malformations (œdèmes, queue tordue, intestin mal enroulé) et sont significativement plus petits et mal proportionnés par rapport à des individus non exposés. Nous avons étudié des têtards jusqu’à six jours après la fécondation, ce que nous permet le cadre bioéthique, et nous n’avons donc pas eu la possibilité de savoir s’ils atteignent l’âge adulte.
Enfin, nous avons porté une attention toute particulière au système cardiaque. La transparence du têtard nous a d’abord permis d’évaluer l’activité cardiaque en comptant le nombre de battements par minute. Cette première observation montre une tachycardie significative après une exposition au cadmium. Nous avons ensuite réalisé une étude structurelle du cœur et mis en évidence une atrophie du cœur, responsable d’un volume cardiaque plus petit, ainsi d’une architecture du myocarde modifiée. Cette désorganisation des tissus cardiaques est responsable d’une capacité du cœur à se contracter dégradée. De telles anomalies ont déjà été observées dans des cardiopathies humaines, sans pour autant avoir été reliées à une exposition au cadmium.
Enfin, nous avons mis en évidence des marqueurs protéiques propres à une contamination au cadmium qui permettent, en partie, d’expliquer les anomalies cardiaques observées.
Valider la spécificité de ces biomarqueurs
Dans de futurs travaux, nous visons à élargir ces données. D’une part, nous voulons évaluer si les biomarqueurs identifiés se retrouvent également chez d’autres organismes afin de déterminer s’ils constituent des marqueurs universels d’une exposition au cadmium, travail déjà commencé sur les embryons de poisson zèbre et de poulet. Nous souhaitons également déterminer si ces biomarqueurs sont spécifiques du cadmium, ou s’ils se retrouvent également suite à l’exposition à d’autres contaminants.
Pour cela, les biomarqueurs seront analysés après exposition à d’autres contaminants environnementaux, tels que des composés œstrogéniques. L’objectif sera de vérifier que les modifications observées sont spécifiques d’une exposition au cadmium et ne résultent pas d’une réponse générale au stress chimique.

Les auteurs ne travaillent pas, ne conseillent pas, ne possèdent pas de parts, ne reçoivent pas de fonds d'une organisation qui pourrait tirer profit de cet article, et n'ont déclaré aucune autre affiliation que leur organisme de recherche.
30.09.2026 à 11:14
Comment l’odorat nous aide à comprendre l’origine et l’évolution de notre cerveau
Anton Crombach, Chercheur, Inria
Texte intégral (2233 mots)
L’ESSENTIEL
L’odorat est un sens tout à fait particulier du point de vue cérébral : c’est notre lien le plus direct avec le monde extérieur.
Les zones cérébrales qui contrôlent l’odorat semblent avoir très peu changé au cours de l’évolution.
Certains neurones du cortex olfactif de la souris ressemblent davantage à ceux des lézards ou des salamandres qu’à ceux du néocortex de la souris.
Saviez-vous que, parmi nos cinq sens, l’odorat est notre lien le plus direct avec le monde extérieur ? Les signaux liés au toucher, à la vue, à l’ouïe et au goût transitent d’abord par une région cérébrale intermédiaire (appelée le thalamus) avant d’atteindre leurs zones spécifiques dans le cortex.
En revanche, lorsque vous sentez une odeur agréable, comme celle de croissants tout juste sortis du four, ou une mauvaise odeur, comme celle d’un toast brûlé tôt le matin, les signaux provenant des molécules odorantes n’ont pas besoin de passer par le thalamus pour atteindre le cortex olfactif du cerveau. Non seulement l’odorat bénéficie de cette connexion particulière, mais, quand on y réfléchit, l’olfaction n’est rien d’autre que la détection des molécules qui nous entourent, ce qui, d’un point de vue évolutif, constitue un moyen très ancien d’apprendre à connaître son environnement. En effet, l’odorat est très répandu chez les animaux, ce qui signifie que nous pouvons comparer les cerveaux des animaux pour en savoir plus sur les origines de notre propre cerveau.


Prenons un peu de recul. Lorsque l’on parle du cerveau, on pense généralement à ce qu’on appelle le néocortex. C’est la partie du cerveau qui s’est considérablement développée chez les humains et les autres primates ; il est considéré comme un élément essentiel pour comprendre des caractéristiques « avancées », telles que la conscience, l’intelligence ou le langage.
On retrouve le néocortex chez tous les mammifères, comme les souris, les chiens ou les humains, mais pas au-delà. Par exemple, les reptiles, tels que les lézards, et les amphibiens, comme les salamandres, n’en possèdent pas. Alors, d’où vient le néocortex ? Comment a-t-il évolué ?
Pour les scientifiques, cette question s’apparente à un casse-tête, comportant de nombreuses pièces connues et de nombreuses pièces manquantes. L’une des pièces manquantes réside dans le fait que le néocortex présente une apparence très différente de celle des cerveaux des lézards et des salamandres, ce qui rend difficile leur comparaison directe.
Heureusement, les humains et les souris possèdent d’autres parties du cerveau qui sont plus faciles à comparer avec les lézards et les salamandres. L’une d’entre elles est le cortex olfactif, la zone du cerveau consacrée à l’interprétation de l’odorat.
En collaboration avec Sara Zeppilli, Alexander Fleischmann (Université Brown, États-Unis) et d’autres chercheurs, nous avons entrepris d’ajouter une pièce au puzzle : une comparaison entre les neurones du cortex olfactif d’une souris, ceux de son néocortex et ceux des cerveaux des reptiles et des amphibiens.
L’analyse des neurones au niveau moléculaire constitue un moyen puissant de mieux comprendre le cerveau. Les technologies expérimentales ont énormément progressé au cours de la dernière décennie, à tel point que nous pouvons désormais déterminer systématiquement les niveaux d’expression de tous les gènes pour chaque cellule d’un tissu donné. Le niveau d’expression d’un gène indique dans quelle mesure ce dernier est nécessaire dans une cellule donnée.
Chez un animal tel que la souris, chaque cellule dispose de l’ensemble des gènes (le génome complet), mais, pour que la cellule remplisse sa fonction dans l’organisme (par exemple, un neurone doit être capable d’envoyer et de recevoir des signaux électriques), elle n’a besoin que d’un sous-ensemble de gènes. Ces informations sont précieuses pour nous, car en observant quels gènes sont exprimés, nous pouvons en apprendre beaucoup sur l’état de la cellule, sur les décisions qu’elle a prises par le passé ou sur les fonctions moléculaires qu’elle exécute. Par exemple, nous pouvons étudier l’ensemble des neurones du cortex olfactif et observer en quoi ils diffèrent des neurones du néocortex et de ceux d’autres espèces.
Décrire les gènes exprimés dans chaque type de neurones
C’est ainsi que nous avons entrepris de décrire d’abord minutieusement le cortex olfactif au niveau moléculaire. Dans l’ensemble, nous avons tiré deux conclusions principales. La première est que, à bien des égards, le cortex olfactif ressemblait à n’importe quelle autre zone corticale, mais présentait toutefois quelques différences marquantes. En nous concentrant sur les neurones, nous avons identifié les types cellulaires habituels du cortex de souris, tels que différents types de neurones excitateurs et inhibiteurs (respectivement, les neurones glutamatergiques et GABAergiques).
En examinant les différents types de neurones excitateurs, nous avons découvert qu’ils changent plus progressivement d’un type de neurone à l’autre dans le cortex olfactif que dans le néocortex. En effet, les types de cellules neuronales olfactives semblent former des gradients d’expression génique assez lisses, tandis que les types de neurones néocorticaux étaient plus nettement distincts et présentaient des changements d’expression plus brusques entre eux.
Bien que ces observations semblent assez simples, elles nous permettent d’approfondir notre compréhension du fonctionnement interne d’une cellule. D’après la théorie mathématique des systèmes dynamiques, nous savons que les modèles de changement « progressifs », par opposition aux modèles « brusques », sont susceptibles d’être générés par des mécanismes de régulation différents, c’est-à-dire par des façons différentes pour un neurone de décider quels gènes lui sont nécessaires ou non.
L’application de ces connaissances mathématiques aux données biologiques n’est pas anodine, et les réponses apportées à ce stade ne sont peut-être pas définitives, mais nous avons finalement conclu que, malgré des similitudes superficielles entre les neurones activateurs du système olfactif et ceux du néocortex, leur organisation interne est assez différente. Les neurones olfactifs de la souris décident quels gènes exprimer d’une manière assez différente de celle des neurones néocorticaux voisins – et nous avons également retrouvé certains de ces schémas olfactifs de prise de décision chez le lézard et la salamandre.
Certains neurones de souris sont plus proches de ceux des lézards que des autres neurones de souris
Cette dernière découverte, valable pour plusieurs espèces, nous a amenés à poser une question évolutive cruciale : les neurones du cortex olfactif sont-ils plus proches des autres régions cérébrales de la souris ou ressemblent-ils davantage aux neurones d’autres espèces non mammifères ?
La réponse s’est avérée surprenante. Les types de neurones du cortex olfactif de la souris ressemblent davantage à ceux des lézards ou des salamandres qu’à ceux du néocortex de la souris. C’est tout à fait remarquable, car depuis 200 millions d’années, les neurones du cortex olfactif de la souris ont évolué au côté de ceux du néocortex de la souris.
Notre deuxième découverte intéressante a été la présence d’un grand nombre de neurones de type immature (c’est-à-dire similaires aux cellules de jeunes souris) dans le cortex olfactif de souris adultes. Nous avons utilisé l’apprentissage automatique pour prédire que, au cours de la vie d’une souris, ces neurones immatures sont destinés à devenir des neurones activateurs. Nous avons émis l’hypothèse qu’ils jouaient un rôle dans la plasticité cérébrale, par exemple pour aider les souris à adapter rapidement leurs circuits neuronaux aux changements de leur environnement. Par exemple, pour détecter de nouvelles odeurs. En effet, en comparant les résultats obtenus chez nos souris de laboratoire, évoluant dans un environnement monotone, à ceux de souris d’origine sauvage vivant dans un milieu plus dynamique, nous avons pu établir que les principales différences entre les cortex olfactifs de laboratoire et sauvages se situaient au niveau des neurones activateurs.
En combinant ces deux résultats, le cortex olfactif de la souris semble avoir conservé trois caractéristiques moléculaires ancestrales, à savoir des changements progressifs dans l’expression génique entre les neurones activateurs, une similitude marquée avec des espèces éloignées sur le plan évolutif, et une plasticité cellulaire accrue grâce à la présence d’un pool de neurones immatures.
En résumé, nous avons créé une ressource sur le cortex olfactif qui profite à nos collègues intéressés par l’olfaction, l’évolution (du cerveau) et la prise de décision cellulaire. Pour nous, il s’agit d’une étude fondamentale sur laquelle nous construisons de nouveaux projets. Actuellement, par exemple, nous l’utilisons dans le cadre d’une étude visant à comprendre comment les cellules du cortex olfactif modifient leur expression génique en réponse à l’apprentissage d’une nouvelle odeur.
Cette étude comparative nous a permis de mieux comprendre à quel point la nature peut faire preuve de souplesse dans la création des types cellulaires. Grâce à l’odorat, nous avons ajouté une pièce au puzzle que constitue l’évolution du cerveau.
Cet article est publié dans le cadre de la Fête de la science (qui a lieu du 2 au 12 octobre 2026), dont The Conversation France est partenaire. Cette nouvelle édition porte sur la thématique « Saveurs savantes ». Retrouvez tous les événements de votre région sur le site Fetedelascience.fr.

Anton Crombach a reçu des financements de l'ANR, l'INCa, l'Inria et les NIH (États-Unis).
- GÉNÉRALISTES
- Ballast
- Fakir
- Interstices
- Issues
- Korii
- Lava
- La revue des médias
- Time France
- Mouais
- Multitudes
- Positivr
- Regards
- Slate
- Smolny
- Socialter
- UPMagazine
- Le Zéphyr
- Idées ‧ Politique ‧ A à F
- Accattone
- À Contretemps
- Alter-éditions
- Contre-Attaque
- Contretemps
- CQFD
- Comptoir (Le)
- Déferlante (La)
- Esprit
- Frustration
- Idées ‧ Politique ‧ i à z
- L'Intimiste
- Jef Klak
- Lignes de Crêtes
- NonFiction
- Nouveaux Cahiers du Socialisme
- ✝ Période
- ARTS
- Actualitté
- Autre Quotidien (L')
- Beaux Arts
- Collateral
- Recours au poème
- Villa Albertine
- THINK-TANKS
- Fondation Copernic
- Institut La Boétie
- Institut Rousseau
- TECH
- Dans les algorithmes
- Framablog
- Goodtech.info
- Libre à lire (April)
- Quadrature du Net
- Revue Eur. Médias et Numérique
- INTERNATIONAL
- Alencontre
- Alterinfos
- Gauche.Media
- CETRI
- ESSF
- Inprecor
- Guitinews
- MULTILINGUES
- Kedistan
- Quatrième Internationale
- Viewpoint Magazine
- +972 mag
- PODCASTS
- Arrêt sur Images
- Le Diplo
- LSD
- Thinkerview